半沙漠地带的水分获取机制与喷雾保湿的生态局限
半沙漠地带,通常指年降水量在100至500毫米之间,蒸发量远大于降水量的过渡性生态系统。在这里,空气相对湿度常年处于低位,土壤水分极度匮乏,构成了植物生存的首要挑战。所谓的“喷雾保湿”,在自然语境下并非指人工干预手段,而是指晨昏时段地表辐射冷却导致的水汽凝结现象,或是偶尔的微量降水通过叶片表面滞留形成的临时水膜。这种自然形成的微环境水分,对于缺乏深层根系或叶片储水结构的短生命周期草本植物而言,是关键的生存契机。
植物在应对这种低湿环境时,演化出了严密的物理与生理屏障。叶片表面的蜡质层、气孔的凹陷结构以及叶面积的缩小,共同降低了非蒸腾性水分流失。当夜间或清晨的雾气附着于植物体表时,部分植物能通过特殊的表皮细胞结构吸收水分,或通过减缓气孔开闭频率来利用这些短暂的高湿窗口期。这种被动的水分获取方式,是自然选择在极端干燥环境中筛选出的基础生存策略,其效率远低于根系从深层土壤汲取水分,却构成了许多先锋物种得以立足的物理基础。
根系策略:深扎与广布的双重适应路径
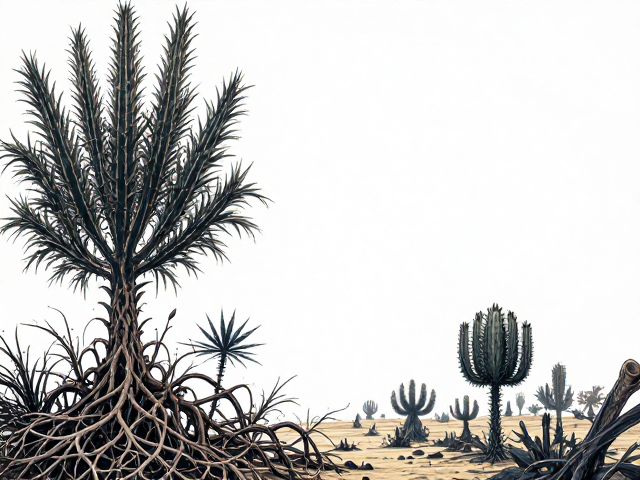
面对地表水分的稀缺,半沙漠地带植物的根系分布呈现出两极分化的特征。深根系植物,如某些豆科灌木或柽柳,能将主根深入地下数米甚至更深处,以穿透毛细管水分布层,直达地下水位。这种策略确保了在长期干旱期间,植物仍能维持基本的生理代谢,但同时也带来了巨大的能量消耗,因为构建和维护庞大的地下生物量需要大量的碳水化合物支持。
相比之下,浅根系植物则采取了广布的策略。它们的侧根在地表附近广泛延伸,覆盖范围远超地上部分冠幅,旨在最大化捕捉偶发的降雨或地表凝结水。这类植物通常具有较短的生命周期,多为一年生草本,它们利用雨季迅速完成发芽、生长、开花和结实的全过程,将种子以休眠状态留在土壤中,等待下一个适宜的水分窗口。这种“快生快死”的策略,是对半沙漠地带降水不可预测性的高度适应,确保了物种在长时间干旱下的遗传信息延续。
叶片形态与生理调节:减少蒸腾与高效利用
叶片是植物进行光合作用和水分蒸腾的主要器官,在半沙漠地带,其形态发生了显著的特化。针叶、鳞片叶或肉质叶成为常见形态。针叶和鳞片叶通过减小受风面积和降低表面温度,有效抑制水分蒸发。例如,某些梭梭树的叶片退化为鳞片状,光合作用主要由绿色枝条替代,从而极大降低了蒸腾表面积。肉质叶则通过发达的薄壁组织储存水分,在干旱时期释放出游离水维持细胞活性,代表植物如芦荟科或景天酸代谢(CAM)植物。
生理调节方面,半沙漠植物常采用景天酸代谢(CAM)途径。这种机制使得植物在夜间打开气孔吸收二氧化碳,并将其固定为有机酸储存于液泡中;白天则关闭气孔,利用储存的二氧化碳进行光合作用。这种时空上的隔离,极大地减少了白天高温下的水分蒸腾损失。此外,许多植物会通过调节细胞内的渗透压物质(如脯氨酸、可溶性糖)的合成,降低细胞水势,从而在土壤水分势极低的情况下,仍能从土壤中吸收水分,维持细胞膨压和生理功能。
群落结构与生物多样性:竞争与共存的动态平衡
在半沙漠地带的植物群落中,物种间的竞争主要体现在水分和光照资源的争夺上。由于资源极度有限,植物之间形成了严密的空间分布格局。通常,灌木作为优势物种,通过庞大的树冠遮蔽地表,减少土壤水分蒸发,同时也为下层草本植物提供必要的遮阴和微气候缓冲。这种“灌木岛效应”提高了局部区域的土壤肥力和水分保持能力,促进了草本植物的生长,增加了群落的生物多样性。
然而,这种平衡极为脆弱。降水量的微小波动会显著改变群落结构。在降水偏多的年份,草本植物迅速扩张,可能暂时抑制灌木幼苗的生长;而在连年干旱年份,灌木因深根系优势占据主导,草本植物则大幅减少甚至局部灭绝。这种动态变化使得半沙漠地带植物群落保持着高度的弹性,物种组成随气候周期发生周期性更替,避免了单一物种垄断资源导致的生态系统崩溃。
人为干预与自然恢复的边界
在生态修复实践中,向半沙漠地带引入人工喷雾系统常被视为快速增加植被覆盖的手段。然而,自然生态系统的水文循环具有严密的自我调节机制。人工喷雾改变了地表微气候,可能导致土壤结构改变、盐分表聚或非目标物种入侵。例如,长期人工补水可能使耐旱的深根系灌木幼苗过度依赖表层水分,削弱其深扎根系的发育,导致其在自然干旱条件下存活率降低。
自然恢复的过程依赖于本地物种的种子库和自然降水节律。研究表明,在半沙漠地带,依靠自然降水和土壤种子库的自然恢复,其形成的植被群落稳定性远高于人工辅助恢复。人工措施应局限于极小范围的种子萌发辅助或幼苗期保护,而非替代自然水文过程。过度依赖人工保湿手段,可能掩盖生态系统真实的承载力边界,导致长期生态失衡。保护半沙漠地带的自然水分循环机制,维持植物原有的适应策略,才是维持该地区生态安全的核心逻辑。